Gerardo Ordaz-Ochoa
Ericka Ramírez-Rodríguez
Centro Nacional de Investigación en Fisiología y Mejoramiento Animal (CENID-FyMA), Instituto Nacional de Investigaciones Forestales Agrícolas y Pecuarias (INIFAP), Querétaro, México. [email protected]
La preparación de las hembras de reemplazo constituye una decisión de manejo fundamental para la productividad futura de una granja porcina. Aunque suele priorizarse el peso corporal antes de la primera inseminación, este indicador no permite diferenciar la proporción de tejido muscular y reservas adiposas. Por ello, una primeriza aparentemente bien desarrollada puede presentar una condición corporal distinta de la esperada. La medición del espesor de grasa dorsal (EGD) complementa esta evaluación y permite comprender su relación con el consumo de alimento, el metabolismo y el desempeño reproductivo (Young et al., 2004; Pérez et al., 2025).
Esta evaluación adquiere especial importancia durante la transición de la gestación a la lactancia, cuando la cerda pasa de acumular reservas corporales a enfrentar una elevada demanda nutricional para la producción de leche. Si el consumo de alimento resulta insuficiente, el organismo moviliza parte de sus reservas energéticas. Por tanto, además de conocer la cantidad de grasa al primer servicio, es importante identificar cómo cambia durante el ciclo reproductivo y qué mecanismos fisiológicos intervienen en su utilización (Eissen et al., 2003; Mosnier et al., 2010).
El primer servicio: ¿cuántas cerdas llegan con la condición deseada?
La condición corporal con la que las hembras de reemplazo inician su vida reproductiva puede variar considerablemente, incluso cuando se desarrollan bajo condiciones de manejo similares. Esta variabilidad se observó en una granja comercial de ciclo completo, donde se dio seguimiento a 203 hembras desde la etapa de crecimiento hasta su primera lactancia. De ellas, 183 alcanzaron las condiciones para ser inseminadas y fueron clasificadas de acuerdo con su EGD al primer servicio. El 31% presentó valores inferiores a 17 mm, el 44% se ubicó entre 17 y 20 mm y el 25% superó los 20 mm (Pérez et al., 2025).
Esta distribución muestra que, aun dentro de una misma unidad de producción, las primerizas pueden llegar al servicio con diferencias importantes en sus reservas adiposas. De hecho, aproximadamente una de cada cuatro hembras presentó más de 20 mm de grasa dorsal, mientras que cerca de una de cada tres registró valores inferiores a 17 mm. Estas diferencias adquieren relevancia porque tanto las reservas insuficientes como las excesivas pueden modificar la manera en que las cerdas responden a las demandas nutricionales y metabólicas de la gestación y la lactancia.
Para evaluar estas diferencias, el EGD se determinó mediante ultrasonografía en el punto anatómico P2, utilizado como referencia para estimar la adiposidad subcutánea. A diferencia del peso vivo, que integra tejidos de distinta naturaleza, o de la apreciación visual de la condición corporal, que puede verse influida por la conformación y el desarrollo muscular, la medición ultrasónica permite estimar de manera más objetiva las reservas adiposas. Por ello, su utilización proporciona información complementaria para caracterizar la condición corporal de las primerizas al primer servicio y dar seguimiento a sus cambios durante el ciclo reproductivo (Maes et al., 2004, citado en Pérez et al., 2025; Young et al., 2004).
La condición corporal cambia de la inseminación al destete
La gestación no produjo un incremento uniforme de las reservas adiposas. En el seguimiento productivo, las hembras que iniciaron con menos de 17 mm ganaron en promedio 3.3 mm de grasa dorsal; aquellas clasificadas entre 17 y 20 mm incrementaron 3.9 mm, mientras que las que superaban 20 mm aumentaron únicamente 1.1 mm (Figura 1). Aunque los tres grupos recibieron un manejo alimenticio propio de la etapa, la magnitud de la acumulación fue distinta según su condición inicial. Esto sugiere que la reserva adiposa con la que una primeriza llega al servicio contribuye a definir su trayectoria corporal durante la gestación (Pérez et al., 2025).
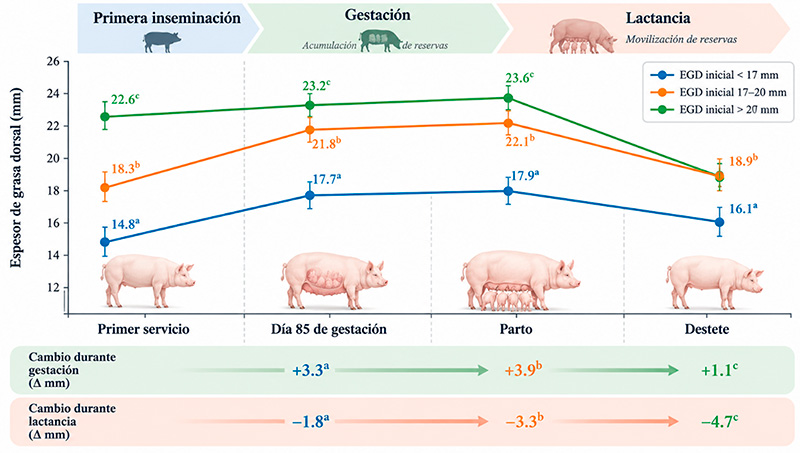
Figura 1. Evolución del EGD por categoría al primer servicio. Fuente: Pérez et al. (2025). Los grupos se definieron al inicio; no representan porcentajes de hembras que cambiaron de categoría.
La interpretación fisiológica de estos cambios requiere considerar que la primeriza continúa su desarrollo somático durante su primera gestación. Los nutrientes disponibles se distribuyen entre mantenimiento, crecimiento materno, desarrollo de la gestación y almacenamiento de reservas. Así, un incremento reducido del EGD no implica necesariamente ausencia de ganancia corporal; puede coexistir con cambios en otros componentes del peso. Por esta razón, evaluar únicamente los kilogramos ganados durante la gestación puede ocultar diferencias relevantes en la composición corporal (Pérez et al., 2025; Pérez et al., 2026).
Además de los promedios de grasa dorsal, el estudio examinó la redistribución de las hembras entre las categorías de EGD al servicio, al parto y al destete. Este análisis resulta especialmente útil porque permite observar que la condición corporal de una cerda no es una característica fija (Figura 1; Pérez et al., 2025).
¿Más reservas equivalen a mejor producción?
Los resultados productivos mostraron que acumular más grasa antes del primer servicio no se acompañó necesariamente de un mejor desempeño posterior (Tabla 1). Durante la lactancia, las hembras de la categoría alta registraron un consumo de alimento inferior al de las hembras de menor EGD y, al mismo tiempo, movilizaron una mayor cantidad de reservas corporales. En contraste, la categoría intermedia de 17-20 mm presentó resultados favorables en varios indicadores de la camada (Pérez et al., 2025).
Tabla 1. Indicadores productivos y reproductivos de cerdas primíparas según el espesor de grasa dorsal al primer servicio (Pérez et al., 2025).
| Indicador | Espesor de grasa dorsal (EGD; mm) | EEM | P-valor | ||
|---|---|---|---|---|---|
| <17 | 17–20 | >20 | |||
| Consumo durante lactancia (kg/día) | 4.5ᵃ | 4.1ᵇ | 3.4ᶜ | 0.097 | <0.0001 |
| Pérdida de EGD durante lactancia (mm) | 1.8ᵃ | 3.3ᵇ | 4.7ᶜ | 0.041 | <0.0001 |
| Pérdida estimada de grasa corporal (kg) | 4.1ᵃ | 6.2ᵇ | 9.6ᶜ | 0.235 | <0.0001 |
| Lechones nacidos vivos (n) | 11.3ᵃ | 11.9ᵇ | 10.9ᵃ | 0.270 | 0.0094 |
| Lechones destetados (n) | 10.1ᵃ | 10.6ᵇ | 10.0ᵃ | 0.259 | 0.0127 |
| Intervalo destete–estro (días) | 5.1ᵃ | 5.8ᵃ | 8.3ᵇ | 0.523 | 0.0039 |
Nota: Los valores corresponden a las medias reportadas en el estudio. ᵃ, ᵇ, ᶜ: medias con diferentes literales dentro de una misma fila presentan diferencias significativas (P < 0.05). EGD: espesor de grasa dorsal; EEM: error estándar máximo de la media. Los valores de P corresponden al efecto principal del EGD al primer servicio. Fuente: Pérez et al. (2025).
La aparente paradoja es relevante para el manejo: una cerda con mayores reservas podría parecer mejor preparada para enfrentar la lactancia, pero también puede mostrar un menor consumo voluntaria de alimento. Si la demanda de nutrientes aumenta y el consumo no acompaña ese incremento, la utilización de las reservas se intensifica. En este contexto, la grasa corporal constituye simultáneamente un recurso energético y una característica relacionada con la regulación del apetito.
Las hormonas ayudan a explicar el menor consumo
El tejido adiposo no actúa únicamente como un depósito pasivo de energía. También participa en la comunicación hormonal entre las reservas corporales, el sistema nervioso y otros tejidos. Entre las señales estudiadas se encuentran la leptina, relacionada con la información sobre disponibilidad energética; la grelina, vinculada con mecanismos de estímulo del apetito; la insulina, fundamental para el metabolismo de nutrientes; y la proteína relacionada con agutí (AgRP), asociada con circuitos que regulan el consumo. Estas señales interactúan con la condición fisiológica de la cerda y no deben interpretarse de manera aislada (Barb et al., 2008; Mosnier et al., 2010).
Para profundizar en estos mecanismos, se analizó un subconjunto de 53 primerizas, con mediciones corporales y determinaciones metabólicas y hormonales durante la transición gestación-lactancia. En esta evaluación, las hembras de mayor EGD registraron un consumo promedio de 3.1 kg diarios durante la lactancia, frente a 4.2 kg en las de menor EGD. Al parto también presentaron concentraciones superiores de leptina (3.2 frente a 2.1 ng/mL), menores concentraciones de grelina (246.9 frente a 305.0 pg/mL) y valores más altos del índice HOMA-IR (5.5 frente a 3.6). Dichos datos, muestran diferencias fisiológicas coherentes con la variación observada en el consumo, aunque no permiten atribuir a una sola hormona la causa de dicha respuesta (Pérez et al., 2026).
La comparación con el peso corporal añadió un elemento de interés. En ese análisis, la clasificación de las hembras por peso al primer servicio no distinguió con la misma claridad el consumo de alimento ni los principales indicadores endocrinos (Figura 2). Esto no resta utilidad al peso vivo como criterio de desarrollo, sino que destaca la conveniencia de interpretarlo junto con la grasa dorsal para obtener una visión más completa de la condición metabólica (Pérez et al., 2026).
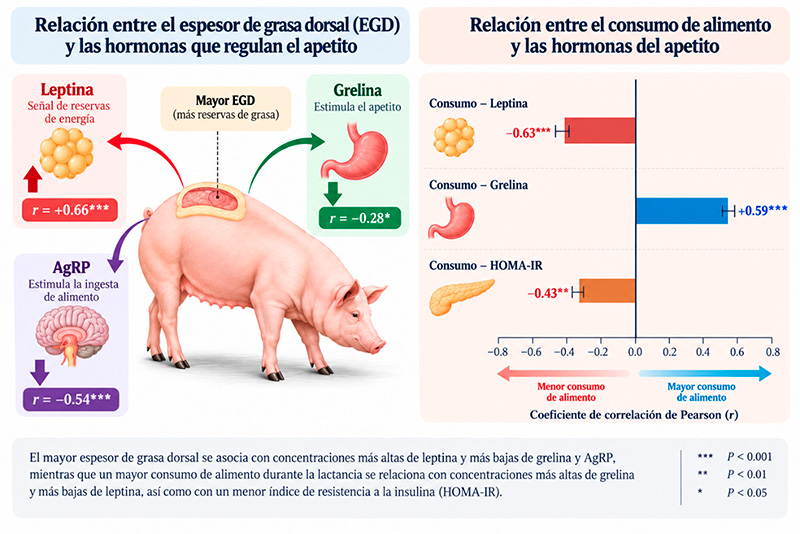
Figura 2. Asociación del espesor de grasa dorsal con las concentraciones de leptina, grelina y proteína relacionada con agutí (AgRP), y su relación con el consumo voluntario de alimento y la resistencia a la insulina durante la lactancia en cerdas primíparas. Fuente: Pérez et al. (2026).
Las asociaciones entre EGD, hormonas y consumo también fueron consistentes: mayor grasa dorsal se relacionó con mayor leptina y menor grelina y AgRP. Por su parte, mayor consumo se asoció con menor leptina y HOMA-IR y mayor grelina (Figura 2). Estas correlaciones describen relaciones estadísticas y no demuestran que una hormona, de manera aislada, sea responsable del consumo observado (Pérez et al., 2026).
Del seguimiento corporal a las decisiones de manejo
En la práctica, la información obtenida respalda la conveniencia de combinar la evaluación del peso vivo con mediciones de EGD en momentos estratégicos. Antes del primer servicio, estas mediciones permiten identificar hembras que, pese a tener pesos semejantes, poseen reservas adiposas diferentes. Durante la gestación, ayudan a valorar si la condición inicial se está modificando de forma adecuada; y al destete, permiten estimar la magnitud de la movilización de reservas ocurrida durante la lactancia. La utilidad principal reside en seguir la trayectoria individual y no únicamente en comparar un valor puntual con un intervalo de referencia.
La distribución de las cerdas: del primer servicio al destete
Uno de los aspectos más relevantes del seguimiento fue observar cómo cambió la distribución de las cerdas según su EGD entre el primer servicio, el parto y el destete. Al servicio, el 31, 44 y 25% de las 183 primerizas se clasificaron con EGD bajo (<17 mm), moderado (17–20 mm) y alto (>20 mm), respectivamente. Durante la gestación, el 64.7% de las hembras inicialmente clasificadas con EGD bajo alcanzó el intervalo de 17-20 mm al parto, mientras que el 35.3% permaneció por debajo de 17 mm. En contraste, las primerizas con EGD moderado y alto conservaron sus respectivas categorías al parto (100%).
Durante la lactancia, la movilización de reservas modificó nuevamente esta distribución. Al destete, entre las hembras inicialmente clasificadas con EGD bajo, el 66.7% permaneció por debajo de 17 mm y el 33.3% se ubicó entre 17 y 20 mm. En el grupo moderado, el 77.5% conservó su categoría y el 22.5% descendió a menos de 17 mm. El cambio más notable ocurrió en las hembras con EGD inicial alto, de las cuales el 78.6% terminó con 17-20 mm y únicamente el 21.4% permaneció por encima de 20 mm (Pérez et al., 2025).
Estos porcentajes corresponden a cada categoría inicial y a las hembras que completaron las etapas evaluadas, no a la población total. Los resultados evidencian que la condición corporal es dinámica y que las trayectorias de acumulación y movilización de grasa dependen de las reservas iniciales, por lo que los promedios generales pueden ocultar diferencias importantes entre animales sometidos a un mismo manejo nutricional.
Pérdida de peso y movilización de grasa: procesos relacionados, pero distintos
Durante la lactancia, las cerdas con EGD inicial bajo, moderado y alto registraron pérdidas de peso corporal de 31.5, 33.6 y 38.1 kg, respectivamente. Sin embargo, estas cifras incluyen la reducción de peso asociada con el parto, por lo que se estimó también la pérdida de peso materno posterior al nacimiento de los lechones, que fue de 7.8, 8.2 y 14.9 kg, respectivamente. Asimismo, la pérdida estimada de masa grasa aumentó conforme al EGD inicial, alcanzando 4.1, 6.2 y 9.6 kg en las mismas categorías (Pérez et al., 2025).
Estos resultados evidencian que la pérdida de peso corporal no refleja necesariamente la magnitud de la movilización de reservas energéticas, especialmente en cerdas primíparas, que deben cubrir simultáneamente sus necesidades de mantenimiento, producción de leche y crecimiento residual. Aunque la masa grasa y proteica se calcularon mediante ecuaciones basadas en el peso vivo y el EGD, y no mediante mediciones directas, estas estimaciones permiten comprender mejor los cambios en la composición corporal (Dourmad et al., 1997, citado en Pérez et al., 2025). Por ello, el peso al destete debe evaluarse junto con el EGD, el consumo de alimento, el tamaño de camada y la condición corporal al siguiente servicio (Pérez et al., 2025; Pérez et al., 2026).
El consumo cambia conforme avanza la lactancia
El consumo promedio de 21 días resume una trayectoria que no es uniforme. Durante los primeros siete días, los promedios fueron 3.3, 3.2 y 3.1 kg/día para los grupos de EGD bajo, moderado y alto. Entre los días 8 y 14, el grupo de mayor EGD consumió 3.7 kg/día, frente a 4.7 y 4.6 kg/día de los otros grupos. En los días 15 a 21, la separación fue todavía más evidente: 5.6, 4.7 y 3.8 kg/día, respectivamente (Pérez et al., 2025).
Esto es relevante porque la demanda de nutrientes para producir leche aumenta durante la lactancia. Una cerda que incrementa poco su consumo conforme avanzan los días puede depender más de sus reservas corporales. Los resultados observacionales no permiten asegurar que la adiposidad inicial sea la única causa de ese patrón: también pueden influir la camada, la capacidad de ingestión, el ambiente y la adaptación individual al parto. No obstante, la consistencia de la asociación justifica prestar especial atención a las hembras que llegan al primer servicio con EGD elevado (Eissen et al., 2003; Pérez et al., 2025).
Desde el punto de vista productivo, el consumo diario resulta más informativo cuando se examina como una secuencia que cuando se resume en un único promedio. El registro por periodos permite distinguir a las hembras que incrementan progresivamente su consumo de aquellas cuya respuesta alimentaria permanece limitada. Esta diferencia es relevante porque la disponibilidad de nutrientes ingeridos condiciona cuánto debe recurrir el organismo a las reservas corporales para sostener la producción de leche (Eissen et al., 2003; Mosnier et al., 2010).
Leptina, grelina, insulina y AgRP: ¿qué nos dicen?
La regulación del apetito durante la lactancia está relacionada con diversas hormonas que informan al organismo sobre sus reservas de energía y necesidades nutricionales. Entre ellas destaca la leptina, producida principalmente por el tejido adiposo, cuya función está vinculada con la regulación del apetito. Las cerdas con mayor EGD presentaron concentraciones superiores de esta hormona al parto (3.2 frente a 2.1 ng/mL), las cuales se asociaron con un menor consumo de alimento durante la lactancia. Esto sugiere que las reservas adiposas pueden influir en las señales hormonales que intervienen en la regulación del apetito (Barb et al., 2008; Pérez et al., 2026).
Por el contrario, la grelina, conocida por su participación en la estimulación del apetito, presentó concentraciones superiores en las hembras con menor EGD (305.0 frente a 246.9 pg/mL) y se relacionó con un mayor consumo de alimento. Asimismo, las cerdas con mayores reservas adiposas mostraron valores más elevados del índice HOMA-IR, utilizado como indicador indirecto de resistencia a la insulina. Estas diferencias sugieren que una mayor acumulación de grasa corporal no necesariamente favorece la respuesta metabólica de las reproductoras durante la lactancia (Pérez et al., 2026).
La regulación del consumo también involucra señales que actúan en el cerebro, como la proteína relacionada con agutí (AgRP), que participa en los mecanismos de estimulación del apetito. Aunque sus concentraciones estuvieron relacionadas con el EGD y la grelina, no se encontró una asociación directa con la cantidad de alimento consumido. Esto refleja que el apetito depende de la interacción de diversas señales hormonales y no de una sola sustancia (Pérez et al., 2026).
Estos resultados sugieren que las cerdas con mayores reservas adiposas presentan un perfil hormonal asociado con menor consumo de alimento durante la lactancia, caracterizado por mayores concentraciones de leptina, menores niveles de grelina y valores superiores de HOMA-IR. Sin embargo, estas relaciones no implican necesariamente una causa directa, ya que el consumo también depende de las necesidades de la camada, las condiciones ambientales y el manejo alimenticio. Por ello, el EGD representa una herramienta complementaria para comprender la relación entre la condición corporal, el metabolismo y la alimentación de las cerdas reproductoras (Pérez et al., 2026).
¿Qué aporta la comparación con el peso corporal?
El peso corporal es uno de los indicadores más utilizados para evaluar el desarrollo de las hembras de reemplazo. Sin embargo, alcanzar un peso adecuado al primer servicio no necesariamente significa que las cerdas tengan una condición corporal similar. Esto se debe a que el peso incluye tanto el tejido muscular como las reservas de grasa, mientras que el EGD permite conocer de manera más específica la cantidad de tejido adiposo subcutáneo. Esta diferencia adquiere importancia durante la lactancia, cuando las necesidades nutricionales aumentan considerablemente. Al comparar hembras con distintos pesos al primer servicio, no se observaron diferencias significativas en el consumo de alimento. En cambio, al clasificarlas según su EGD, las diferencias fueron más evidentes: las cerdas con mayores reservas adiposas tendieron a consumir menos alimento durante esta etapa (Pérez et al., 2025).
Una situación similar se observó en la respuesta hormonal. El EGD mostró relaciones más estrechas con indicadores como la leptina, la grelina y la insulina, así como con el índice HOMA-IR, que las registradas para el peso corporal. Esto sugiere que la cantidad de grasa dorsal proporciona información adicional sobre el estado metabólico de las reproductoras y su posible relación con la regulación del apetito (Pérez et al., 2026). Por ello, el peso corporal y el EGD no deben considerarse indicadores excluyentes, sino herramientas complementarias. Mientras que el primero permite evaluar el crecimiento y desarrollo general de las primerizas, el segundo ayuda a caracterizar sus reservas adiposas. Su evaluación conjunta, acompañada de la observación de la condición corporal, ofrece una perspectiva más completa para orientar el manejo de las hembras de reemplazo.
De los resultados a las decisiones en granja
En las primerizas de reemplazo conviene registrar el peso y el EGD antes del primer servicio. Una hembra con peso aparentemente adecuado puede tener reservas adiposas insuficientes o excesivas. Identificar esa situación antes de la inseminación brinda más margen de ajuste que intentar corregirla cuando la gestación está avanzada (Young et al., 2004; Pérez et al., 2025).
Durante la gestación, es útil revisar la evolución de la condición corporal en puntos definidos del calendario de manejo, considerando que la respuesta depende de la condición inicial. El objetivo no es aumentar indiscriminadamente la grasa, sino sostener un crecimiento y una gestación adecuados sin favorecer excesos de adiposidad. La ración debe adaptarse a la condición, a la genética, al peso y a los objetivos productivos de cada sistema (Pérez et al., 2025).
En maternidad, el registro del consumo diario permite detectar hembras que no incrementan suficientemente su consumo conforme avanza la lactancia. El seguimiento conjunto de consumo, EGD y peso al destete puede ayudar a reconocer una movilización excesiva de reservas y orientar el manejo del siguiente ciclo. Las diferencias observadas en los estudios constituyen asociaciones poblacionales; no justifican fijar umbrales universales ni establecer tratamientos hormonales a partir de una sola medición (Pérez et al., 2025; Pérez et al., 2026).
Conclusión
La condición corporal de las cerdas primerizas constituye un aspecto importante de su preparación para la vida reproductiva, especialmente por los cambios fisiológicos y metabólicos que experimentan durante la gestación y la lactancia. Las diferencias en las reservas adiposas desde el primer servicio pueden relacionarse con el consumo de alimento, la movilización de tejidos corporales y la regulación hormonal, sin que una mayor acumulación de grasa represente necesariamente una ventaja productiva. En este contexto, mantener un equilibrio en las reservas corporales y dar seguimiento a sus cambios a lo largo del ciclo reproductivo adquiere especial relevancia. La evaluación conjunta del peso vivo, el espesor de grasa dorsal y los indicadores productivos permite comprender mejor la condición de las reproductoras y contribuir a un manejo nutricional más adecuado durante las distintas etapas de producción.
Referencias
- Barb, C. R., Hausman, G. J., y Lents, C. A. (2008). Energy metabolism and leptin: Effects on neuroendocrine regulation of reproduction in the gilt and sow. Reproduction in Domestic Animals, 43(Suppl. 2), 324–330. https://doi.org/10.1111/j.1439-0531.2008.01173.x
- Bortolozzo, F. P., Zanin, G. P., Ulguim, R. D., y Mellagi, A. P. (2023). Managing reproduction in hyperprolific sow herds. Animals, 13, 1842. https://doi.org/10.3390/ani13111842
- Eissen, J. J., Apeldoorn, E. J., Kanis, E., Verstegen, M. W. A., y De Greef, K. H. (2003). The importance of a high feed intake during lactation of primiparous sows nursing large litters. Journal of Animal Science, 81, 594–603. https://doi.org/10.2527/2003.813594x
- Maes, D. G. D., et al. (2004). Estudio sobre medición de grasa dorsal en cerdas, citado en Pérez et al. (2025). [Verificar ficha bibliográfica completa antes del envío].
- Mosnier, E., Etienne, M., Ramaekers, P., y Père, M.-C. (2010). The metabolic status during the peri partum period affects the voluntary feed intake and the metabolism of the lactating multiparous sow. Livestock Science, 127, 127–136. https://doi.org/10.1016/j.livsci.2009.06.023
- Pérez, R. E., López, M., Ordaz, G., y Ortiz, R. (2025). Effect of the back fat thickness and body weight of gilts at the time of service on their productive performance during gestation and lactation in a commercial herd. Animal Science Journal, 96, e70089. https://doi.org/10.1111/asj.70089
- Pérez, R. E., Ordaz, G., López, M., y Ortiz, R. (2026). Backfat thickness at first insemination as a determinant of endocrine regulation of appetite during the gestation-lactation transition in primiparous gilt. Domestic Animal Endocrinology, 95, 106997. https://doi.org/10.1016/j.domaniend.2026.106997
- Young, M. G., et al. (2004). Comparison of three methods of feeding sows in gestation and the subsequent effects on lactation performance. Journal of Animal Science, 82, 3058–3070. https://doi.org/10.2527/2004.82103058x